肝细胞癌(hepatocellular carcinoma, HCC)是全球范围内发病率和死亡率均较高的恶性肿瘤, 其发生发展机制复杂, 涉及多基因、多通路的异常调控. 锌指蛋白(zinc finger proteins, ZNFs)家族作为一类重要的转录调控因子, 广泛参与细胞增殖、分化、凋亡等过程. 其中, C2H2型ZNF占据该家族成员的绝大多数, 并在HCC的发生、进展、转移及耐药中扮演关键角色. 本文系统梳理了ZNFs的结构特征与分类, 以C2H2型为主线, 重点阐述不同成员在HCC中发挥促癌或抑癌作用的具体分子机制, 深入探讨ZNFs在不同通路间的互作特征. 结合现有临床与基础研究, 本文对ZNFs在HCC早期诊断、预后模型构建及靶向治疗中的转化价值进行分析和预测, 旨在为深入理解HCC的病理机制及开发新型诊疗策略提供理论依据.
关键词: 肝细胞癌; C2H2型锌指蛋白; 生物标志物; 诊断; 预后
核心提要: 锌指蛋白(zinc finger proteins, ZNF)在肝细胞癌(hepatocellular carcinoma, HCC)发生发展中具有显著的双重性. 当前研究热点已从单纯识别异常表达, 转向机制干预: 即靶向抑制促癌ZNF, 或恢复抑癌ZNF功能. 未来趋势是开发基于ZNFs的联合疗法, 以克服肿瘤耐药性, 实现HCC的精准诊断和治疗.
引文著录: 王怡恺, 党双锁. C2H2型锌指蛋白在肝细胞癌发生发展中的作用. 世界华人消化杂志 2026; 34(10): 783-790
Role of C2H2-type zinc finger proteins in hepatocellular carcinoma development and progression
Yi-Kai Wang, Shuang-Suo Dang
Yi-Kai Wang, Shuang-Suo Dang, Department of Infectious Diseases, The Second Affiliated Hospital of Xi'an Jiaotong University, Xi'an 710004, Shaanxi Province, China
Supported by: Noncommunicable Chronic Diseases-National Science and Technology Major Project, No. 2024ZD0526200.
Corresponding author: Shuang-Suo Dang, PhD, Professor, Chief Physician, Department of Infectious Diseases, The Second Affiliated Hospital of Xi'an Jiaotong University, No. 157 Xiwu Road, Xincheng District, Xi'an 710004, Shaanxi Province, China. dang212@126.com
Received: June 4, 2026
Revised: July 10, 2026
Accepted: August 6, 2026
Published online: October 28, 2026
Hepatocellular carcinoma (HCC) is a highly prevalent and lethal malignancy worldwide, characterized by a complex pathogenesis involving the aberrant regulation of multiple genes and signaling pathways. The zinc finger protein (ZNF) family, a major class of transcription regulators, plays pivotal roles in diverse cellular processes, including proliferation, differentiation, and apoptosis. Among them, C2H2-type zinc finger proteins constitute the vast majority of this family and have emerged as key players in HCC initiation, progression, metastasis, and drug resistance. This review systematically outlines the structural features and classification of ZNFs, with a particular focus on C2H2-type members. We elaborate on the specific oncogenic or tumor-suppressive mechanisms of distinct ZNFs in HCC and explore their crosstalk across various signaling pathways. By integrating current clinical and preclinical evidence, this article critically evaluates the translational potential of ZNFs in early diagnosis, prognostic modeling, and targeted therapy for HCC. Collectively, this review aims to provide a theoretical foundation for deepening our understanding of HCC pathophysiology and to inform the development of novel diagnostic and therapeutic strategies.
Key Words: Hepatocellular carcinoma; C2H2-type zinc finger proteins; Biomarkers; Diagnosis; Prognosis
核心提要: 锌指蛋白(zinc finger proteins, ZNF)在肝细胞癌(hepatocellular carcinoma, HCC)发生发展中具有显著的双重性. 当前研究热点已从单纯识别异常表达, 转向机制干预: 即靶向抑制促癌ZNF, 或恢复抑癌ZNF功能. 未来趋势是开发基于ZNFs的联合疗法, 以克服肿瘤耐药性, 实现HCC的精准诊断和治疗.
0 引言
原发性肝癌是全球最常见且恶性程度最高的恶性肿瘤之一, 发病率居第六位, 死亡率居第三位, 其中80%以上为肝细胞癌(hepatocellular carcinoma, HCC)[1,2]. 中国是HCC疾病负担最重的国家, 每年新增HCC患者367700例, 死亡316500例[3]. 然而HCC起病隐匿发现时多进展至晚期, 可手术切除的患者比例仅为10%-15%, 五年生存率仅为18%[4,5]. 尽管近年来HCC的诊断和治疗手段有所进步, 但由于其高度异质性、早期诊断困难以及易产生耐药性, 患者总体预后仍然较差. 因此, 进一步阐明HCC发生和发展的分子机制, 寻找早期预防和延缓HCC进展的药物以及潜在的治疗靶点, 具有重要意义.
锌指蛋白(zinc finger proteins, ZNFs)家族是一类在真核生物中广泛存在的蛋白质, 在细胞中主要作为转录因子(transcription factors, TFs)发挥作用, 参与包括转录调控、泛素介导的蛋白质降解、信号传导、肌动蛋白靶向、DNA修复和细胞迁移等多种生物学过程[6]. 近年来, 越来越多的研究表明ZNFs在多种恶性肿瘤中异常表达, 并在肿瘤发生发展中发挥重要作用. 在HCC中, ZNFs家族成员通过多种信号通路和分子机制参与HCC的起始、进展、转移和耐药过程. 鉴于C2H2型ZNF在人类基因组中占比最高(约占所有ZNFs的90%), 且其成员(如ZNF703、ZNF689、ZNF746、ZNF706等)在HCC中表现出最显著的临床相关性, 本文将以C2H2型ZNF为核心主线, 系统综述其在HCC中的作用机制及临床意义, 并对未来研究趋势与转化路径进行预测性分析, 为HCC的精准诊断和治疗提供新的思路.
1 ZNF的结构特征与分类
ZNFs家族为目前世界上已知成员数量最为庞大的具有指状DNA结合结构域的TFs家族之一[7]. ZNFs首次发现是在20世纪80年代末期, 研究人员从非洲爪蟾中分离出了TF IIIa[6]. 随着研究的深入[8], 人们发现这一类蛋白均由锌离子维持, 并且通过结合特定的DNA序列发挥转录调节作用. 对其结构进行解析发现, 经典的锌指结构域包含一个α-螺旋和两个β-折叠, 这一结构是其发挥生物学功能的关键[9]. 基于锌指结构域的折叠模式与配位特征, ZNFs共分为三十类, 包括C2H2结构域、植物同源结构域和LIM结构域等, 其中最经典的是C2H2类锌指[10]. 除了锌指序列外, ZNFs还包含几个在细胞生物学过程中发挥不同作用的结构域, 包括BTB, Krüppel相关盒(Krüppel-associated box, KRAB)结构域, SET结构域和SCAN结构域[7]. 然而, 在功能与临床转化研究中, 依据其附加的功能结构域及生物学作用, ZNFs可进行以下划分.
1.1 核心结构域: C2H2型ZNF
C2H2型ZNFs是数量最为庞大且与人类疾病关联最密切的一类ZNFs. 其核心特征在于拥有串联重复的C2H2锌指结构域, 每个结构域通常由两个反向平行的β折叠和一个α螺旋构成(即ββα构象)[11]. 在该构象中, 两个半胱氨酸(cysteine, Cys)和两个组氨酸(histidines, His)残基共同配位一个锌离子, 形成稳定的"指状"空间结构. 这类蛋白大多作为TF发挥作用, 其α螺旋能够特异地插入DNA双螺旋的大沟中, 识别并结合特定的DNA序列, 从而精确调控下游靶基因的转录与表达[12]. 在HCC相关研究中, 绝大多数被证实具有明确促癌或抑癌功能的ZNFs均属于C2H2型, 因此进一步对其进行机制剖析具有重要意义.
1.2 功能结构域与亚型划分: KRAB、BTB等修饰域
在C2H2型ZNF的分子框架上, 常融合不同的功能结构域以扩展其调控维度. KRAB型与BTB型并非独立于C2H2的平行类别, 而是C2H2型在功能特化过程中的重要亚型.
KRAB型ZNFs的典型结构是在N端包含一个保守的KRAB结构域, 而在C端则连接有多个C2H2型锌指结构[13]. KRAB型ZNFs主要充当转录抑制因子. 其作用机制是通过C端的锌指结构负责识别并结合特定的DNA序列, 而N端的KRAB结构域则负责招募如组蛋白去乙酰化酶(histone deacetylase, HDACs)和异染色质蛋白1等辅阻遏物复合体, 从而引发局部染色质压缩和修饰, 最终抑制相关基因的转录[14].
BTB型ZNFs是另一类重要的ZNF家族, 其特征是含有BTB结构域, 该结构域介导蛋白质的同源或异源二聚化[15]. 这类蛋白通常利用其锌指结构域结合DNA, 同时通过BTB结构域介导的寡聚化以及与其它染色质修饰复合物的相互作用, 广泛参与转录调控和染色质重塑过程.
1.3 其他类型ZNFs
除C2H2核心框架外, ZNFs家族还包含其他具有特殊催化或识别功能的类型. 例如, ZDHHC型棕榈酰转移酶是一类具有酶活性的特殊ZNFs, 其催化中心包含一个高度保守的Asp-His-His-Cys(DHHC)基序[16]. 它们主要负责催化蛋白质底物的S-棕榈酰化修饰, 参与调控蛋白质的膜定位、稳定性和相互作用[17]. 在哺乳动物细胞中, 目前已鉴定出23个ZDHHC家族成员, 共同构成了一个关键的翻译后修饰调控系统.
GATA型ZNFs含有特征性的GATA锌指结构域, 通常作为TF发挥作用. 它们能识别并结合DNA序列中的"GATA"模体, 在造血细胞分化、心脏发育、细胞增殖与凋亡等多种生物学过程中发挥核心的调控作用[18,19]. 在HCC研究中, GATA锌指结构域蛋白1(GATA zinc finger domain containing 1, GATAD1)等GATA家族成员虽不属C2H2型, 但其异常表达与HCC进展密切相关, 常作为C2H2型调控网络的补充被纳入综合分析.
2 ZNF在HCC中表达异常
大量临床研究表明, 多种ZNFs在HCC组织中异常表达, 且其表达水平与患者的临床病理特征和预后密切相关. 既往的研究发现, ZNFs在HCC中呈现出促癌与抑癌的双重作用.
2.1 促癌与抑癌作用的文献分布特征
综合前期文献报道, 发挥促癌作用的ZNFs数量明显多于抑癌成员. 这一现象主要与HCC的基因组不稳定性有关: 促癌ZNFs, 如ZNF703、ZNF689、ZNF746、ZNF706、GATAD1、X染色体耦联ZNF(zinc finger protein, X-linked, ZFX)等, 通过多因基因扩增、启动子低甲基化或转录激活而持续高表达, 直接驱动肿瘤恶性表型[19-24]. 相比之下, 抑癌ZNFs, 如ZNF382、Myc互作ZNF1(Myc-interacting zinc finger protein 1, Miz1)、ZNF与同源盒2(zinc fingers and homeoboxes 2, ZHX2)、ZNF774等, 的失活多依赖于表观遗传沉默或转录下调, 其作用在HCC早期启动阶段尤为关键, 但在晚期进展中常被促癌信号网络所掩盖[25-28]. 因此, 尽管双重性客观存在, 但当前临床样本中促癌表型的检出率与预后负相关性更为显著.
2.2 表达异常的分子基础
ZNF703的高表达与HCC肿瘤体积增大、包膜浸润、微血管侵袭等恶性特征相关, 是预后不良的指标, 预示着患者的总生存期更短、复发率更高[20]. 类似地, ZNF689和ZNF746的过表达也与HCC患者较差的预后相关[21,22]. 其中, ZNF689的表达水平与肿瘤大小、包膜浸润和微血管侵袭有关, 是影响患者总生存期和无进展生存期的独立预后因素[21]. ZNF706在HCC组织和细胞系中也普遍存在显著上调, 其高表达同样与患者的不良预后密切相关[23]. 值得注意的是, 含有GATAD1在超过76%的原发性HCC中表达, 而在正常肝组织中沉默, 其核蛋白的高表达是HCC患者生存率低的独立风险因素[19]. 此外, ZFX的上调表达若与上皮细胞粘附分子(epithelial cell adhesion molecule, EpCAM)的高表达共存, 则强烈提示肿瘤具有侵袭性的临床病理特征和不良预后[24]. ZDHHC20则是通过介导关键蛋白质的棕榈酰化修饰, 来促进HCC的发生发展[29].
与之相反, 另一部分ZNFs在HCC中发挥抑癌作用, 其表达往往下调甚至沉默. 这些蛋白的表达失活通常涉及表观遗传学调控机制. 例如, ZNF382在HCC组织和细胞中因启动子区高频甲基化而表达下调, 且与早期HCC患者生存率较差密切相关[25]. Miz1在HCC小鼠模型及许多患者组织中表达降低, 其表达水平与疾病复发和不良预后呈负相关[26]. ZHX2同样因启动子高甲基化而导致表达降低, 进而促进肿瘤发生[27]. ZNF774则通过与核小体重塑和去乙酰化酶复合物结合抑制HCC细胞增殖和侵袭, 而其表达下调会解除对HCC细胞的抑制作用[28]. 因此, ZNFs的调控失衡是HCC发生发展的核心驱动力之一.
3 ZNF驱动HCC发生与进展的分子机制
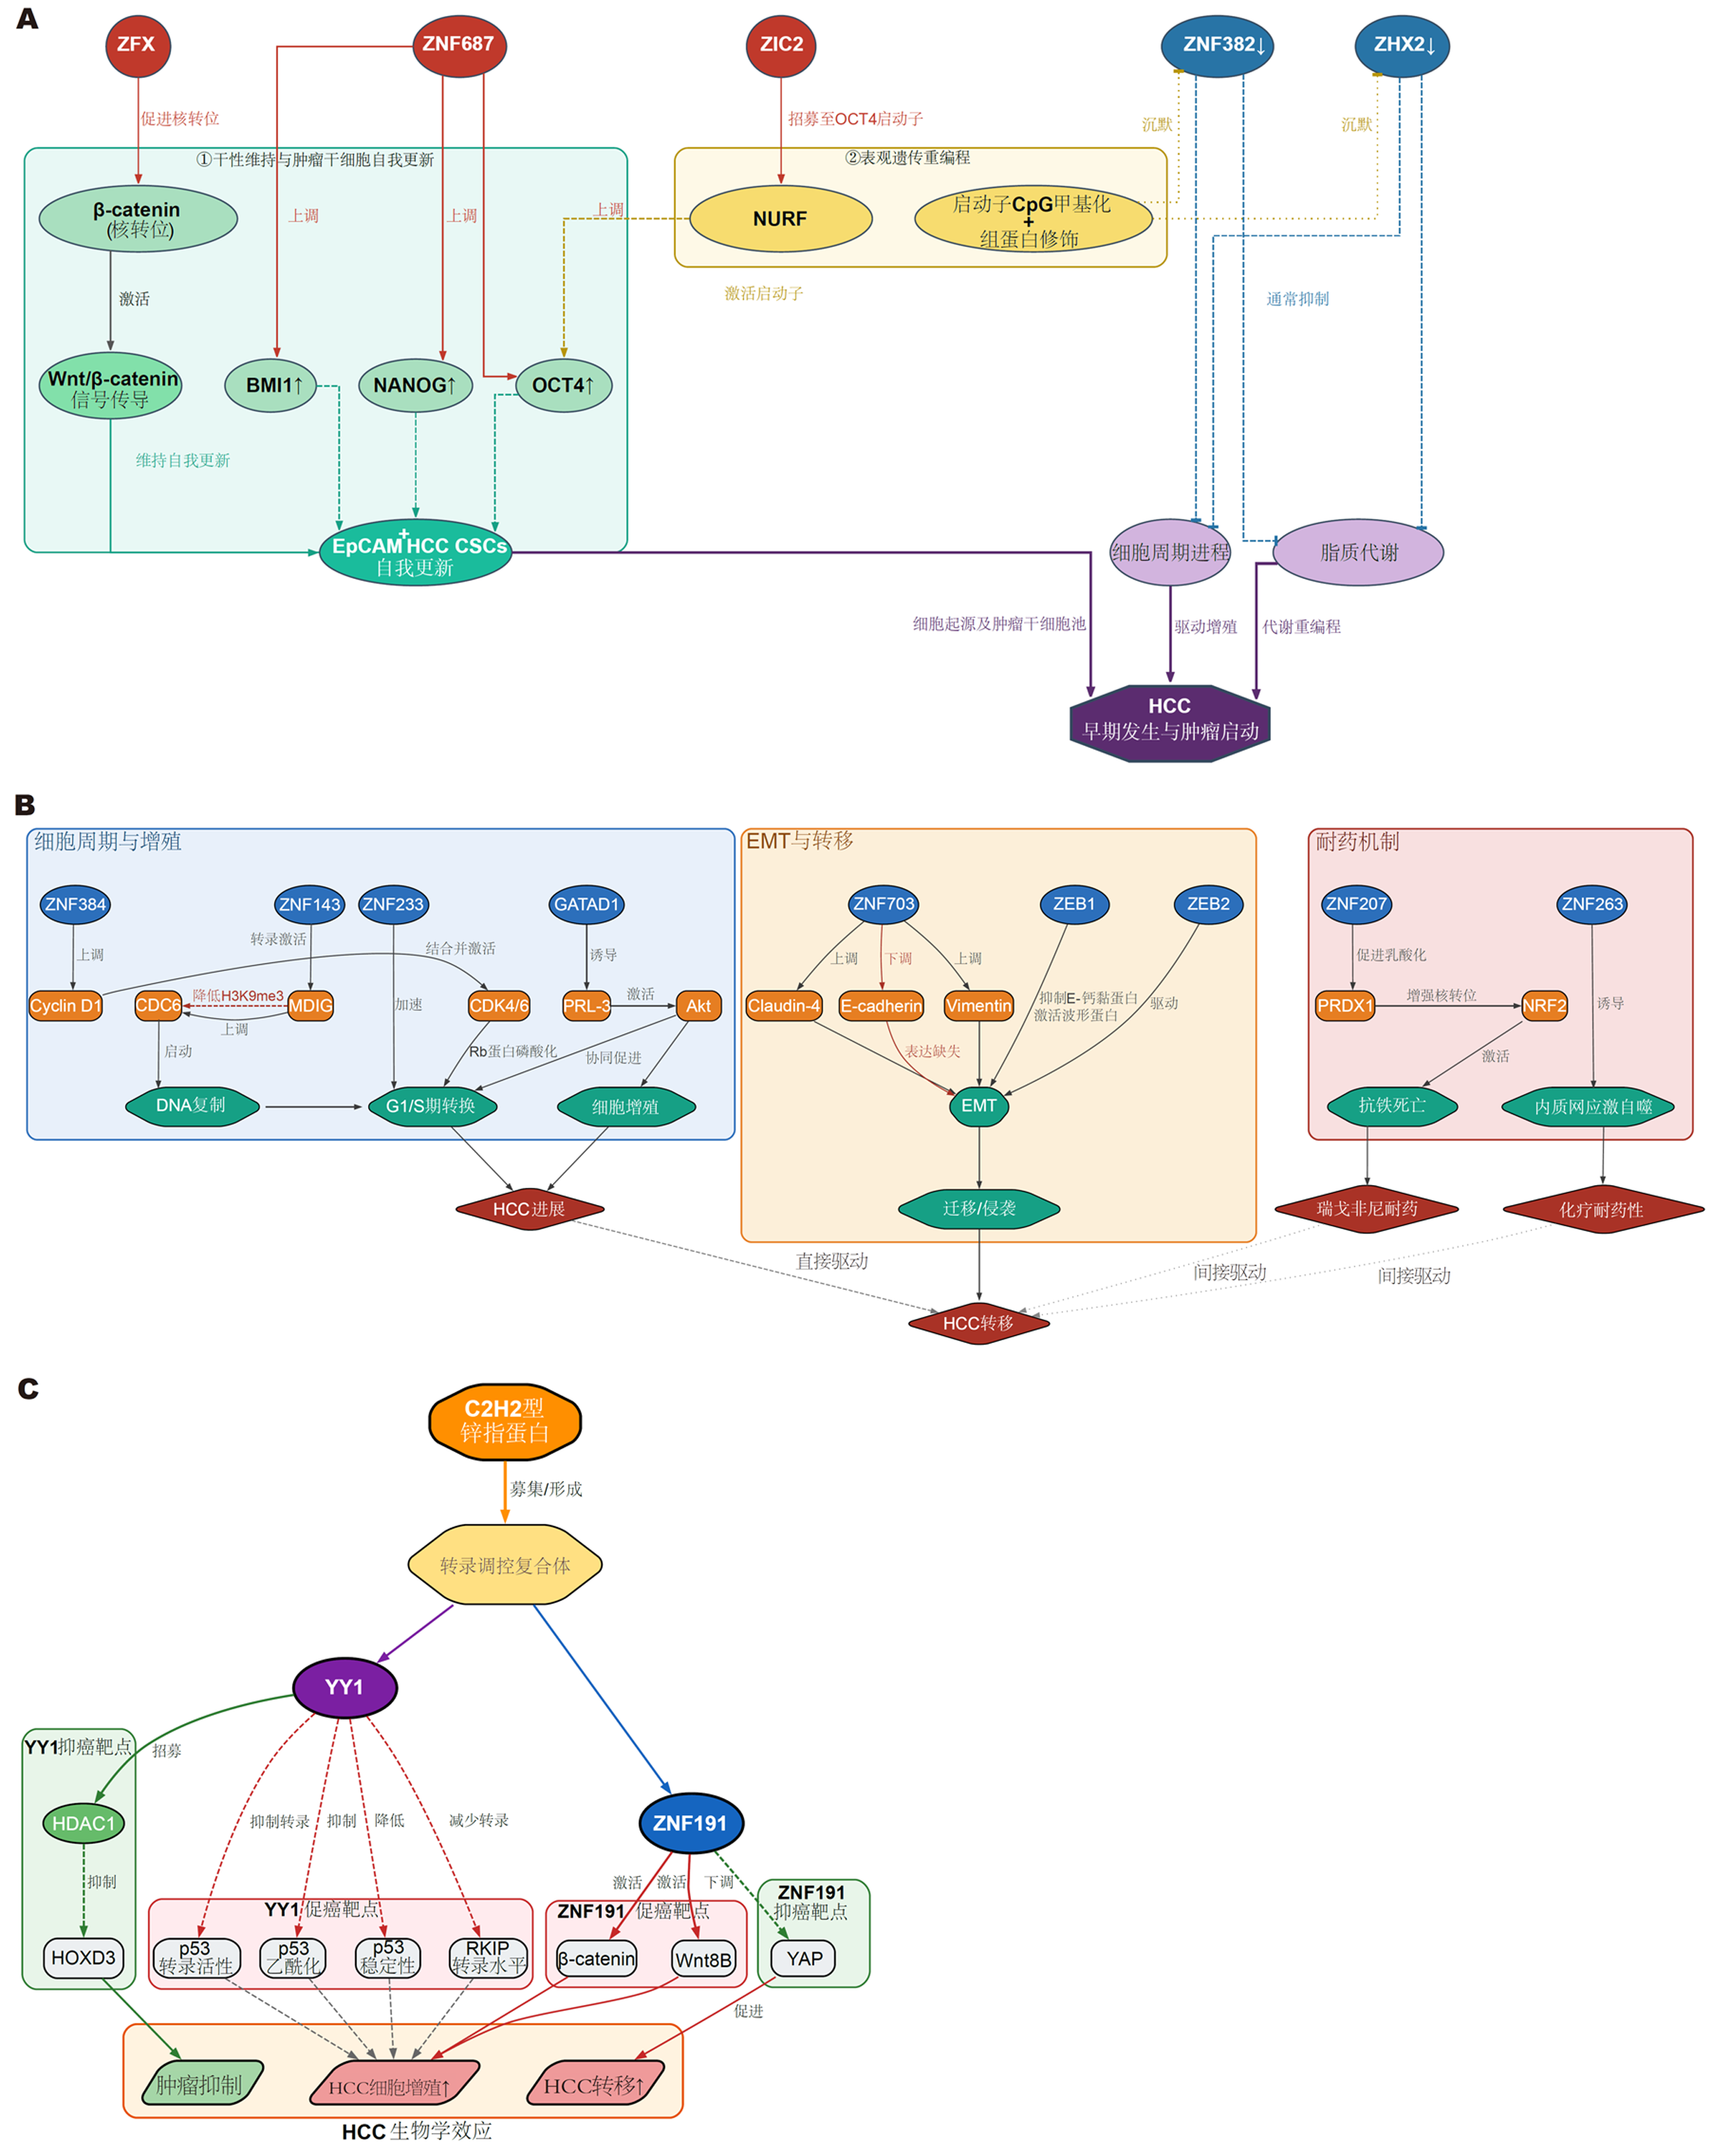
ZNFs并非单一作用于某一病理环节, 而是贯穿HCC从早期启动到晚期进展的全过程, 并伴随复杂的信号分子互作(图1).
图1 C2H2型锌指蛋白调控HCC发生发展的分子机制.
A: 驱动HCC早期发生与肿瘤启动; B: 促进HCC恶性进展、转移与治疗耐药; C: ZNFs信号通路的双重作用. Akt: 蛋白激酶B; BMI1: BMI原癌基因多梳环指蛋白; CDC6: 细胞分裂周期蛋白6; CDK4/6: 细胞周期蛋白依赖性激酶4/6; Claudin-4: 紧密连接蛋白4; CpG: 胞嘧啶-磷酸-鸟嘌呤; CSCs: 肿瘤干细胞; Cyclin D1: 细胞周期蛋白D1; E-cadherin: E-钙黏蛋白; EMT: 上皮-间充质转化; EpCAM: 上皮细胞粘附分子; GATAD1: GATA锌指结构域蛋白1; HCC: 肝细胞癌; HOXD3: 同源盒基因D3; MDIG: 矿物粉尘诱导基因; NANOG: Nanog同源盒; NRF2: 核因子红细胞2相关因子2; NURF: 核小体重塑因子; OCT4: 八聚体结合转录因子4; PRDX1: 过氧化物还原酶1; PRL-3: 肝再生磷酸酶3; RKIP: Raf激酶抑制蛋白; Vimentin: 波形蛋白; YAP: Yes相关蛋白; YY1: 阴阳1; ZEB1: 锌指E盒结合同源蛋白1; ZEB2: 锌指E盒结合同源蛋白2; ZFX: X染色体耦联ZNF; ZHX2: ZNF与同源盒2; ZIC2: 小脑ZNF2; ZNF143: 锌指蛋白143; ZNF191: 锌指蛋白191; ZNF207: 锌指蛋白207; ZNF233: 锌指蛋白233; ZNF263: 锌指蛋白263; ZNF382: 锌指蛋白382; ZNF384: 锌指蛋白384; ZNF687: 锌指蛋白687; ZNF703: 锌指蛋白703; β-catenin: β-连环蛋白.
3.1 驱动HCC早期发生与肿瘤启动
在HCC癌前病变与早期启动阶段, ZNFs主要通过表观遗传重编程、代谢适应与干细胞特性维持推动肿瘤发生. ZFX在EpCAM+ HCC干细胞中高富集, 通过促进β-catenin核转位与转录活性, 维持该干细胞群的自我更新能力, 为肿瘤发生提供细胞来源[30]. ZNF687则通过上调BMI原癌基因多梳环指蛋白、八聚体结合转录因子4(octamer-binding transcription factor 4, OCT4)、Nanog同源盒等多种因子, 增强早期肿瘤形成能力[31]. 小脑ZNF2通过表观遗传调控, 招募核小体重塑因子复合体至OCT4启动子区以激活其表达, 进而维持HCC干细胞的自我更新潜能[32]. 此外, 抑癌ZNFs, 如ZHX2和ZNF382的早期表观遗传沉默, 解除了对脂质代谢与细胞周期的抑制, 为HCC的启动创造了微环境[25,33]. 因此, 靶向早期ZNFs介导的干性维持网络, 可能成为阻断HCC发生的关键干预窗口.
3.2 促进HCC恶性进展、转移与治疗耐药
进入进展期后, ZNFs通过驱动细胞周期、诱导上皮-间充质转化(epithelial mesenchymal transition, EMT)及介导治疗耐药加速肿瘤恶化. ZNF384能够特异性识别并上调细胞周期蛋白D1(Cyclin D1)的表达, 进而促进与CDK4/6的结合, 加速G1/S期转换[34]; ZNF143则通过转录激活组蛋白去甲基酶矿物粉尘诱导基因, 进而促进DNA复制起始关键因子细胞分裂周期6蛋白的表达, 并通过减少其启动子区的抑制性组蛋白修饰来推动细胞周期进展[35]; ZNF233蛋白也被证实可促进G1/S期转换加速肿瘤细胞增值[36]; GATAD1则通过诱导肝再生磷酸酶3(phosphatase of regenerating liver 3, PRL-3)表达, 激活Akt信号通路, 协同促进细胞增殖与周期进程[19]. 在转移层面, ZNF703通过直接激活紧密连接蛋白Claudin-4的表达, 并同时下调E-钙粘蛋白、上调波形蛋白, 从而诱导EMT表型[20]; 锌指E盒结合同源蛋白1和2, 则通过抑制上皮标志物、激活间质标志物表达, 显著增强HCC细胞的迁移与侵袭能力[37,38]. 在耐药机制上, ZNF207通过促进过氧化物还原酶1(peroxiredoxin 1, PRDX1)的乳酸化修饰, 增强核因子红细胞2相关因子2(nuclear factor erythroid 2-related factor 2, NRF2)核转位, 激活抗铁死亡通路导致瑞戈非尼耐药[39]; ZNF263激活内质网应激相关的自噬基因, 增加细胞的化疗耐药性[40]. 综上, ZNFs介导的代谢重编程与应激适应是晚期HCC耐药的核心枢纽.
3.3 ZNFs信号通路的双重作用
当前研究正从单一ZNF调控靶基因模式转向ZNFs信号通路互作影响. ZNFs并非孤立作用, 而是通过蛋白-蛋白相互作用形成转录调控复合体. 例如, TF阴阳1(yin-yang 1, YY1)与ZNF191均展现出双向调控特性: YY1可通过抑制p53的转录活性、乙酰化和稳定性及减少Raf-1激酶抑制蛋白的转录促进HCC, 但在特定微环境下亦可能通过招募HDAC1抑制同源盒基因D3发挥抑癌作用[41,42]; ZNF191既可激活β-catenin和Wnt8B促进HCC细胞增殖, 同时也可以下调YAP抑制HCC转移[43-45]. 这种双重作用源于ZNFs对染色质及与其他TFs的竞争性结合. 因此, 未来解析ZNFs-DNA结合特异性与ZNFs-ZNFs异源二聚化界面, 将揭示多靶点协同调控的信号网络, 可以为克服单靶点耐药提供理论支撑.
4 ZNF在HCC诊断和预后中的价值
4.1 早期诊断与预后模型
在HCC的临床诊断中, 甲胎蛋白(alpha-fetoprotein, AFP)是目前应用最广泛的血清标志物, 但其敏感性与特异性存在局限. ZNF ZHX2和含锌指和BTB域20作为AFP转录抑制因子, 其表达状态或功能失活可直接反映AFP异常重激活的分子基础, 为理解AFP调控异常提供新的诊断思路[46]. CTA家族的ZNF成员ZNF165, 在正常肝组织沉默而在HCC中异常表达, 可诱发特异性体液免疫反应, 其自身抗体检测有望成为AFP的重要补充[47].
在预后评估方面, 多种ZNFs的表达水平已被证实与HCC患者的预后显著相关. 研究表明ZNF703、ZNF689、ZNF746、GATAD1的高表达以Miz1的低表达及均提示不良预后[19-22,26]. 此外, ZNF ZFX与EpCAM的高表达均与HCC的侵袭性病理特征相关, 对ZFX和EpCAM进行联合检测同样可作为评估HCC患者预后的重要综合指标[24].
未来, HCC预后模型将进一步整合ZNFs动态表达谱、空间转录组定位及免疫微环境特征, 实现个体化风险分层与疗效预测.
4.2 靶向干预策略与联合治疗趋势
针对促癌ZNFs, 小分子抑制剂与核酸靶向技术展现出潜力. TF ZNF703可通过激活Claudin-4表达诱导EMT并导致索拉非尼耐药[20]. 既往对于乳腺癌的研究中[48,49], 联合应用ZNF703 RNA干扰与布洛芬, 可协同抑制COX-2活性、促进细胞凋亡, 并通过激活Akt/mTOR信号通路增强肿瘤对他莫昔芬的敏感性. 因此靶向抑制ZNF703有望成为逆转HCC耐药的新策略. 另一个潜在靶点ZNF207, 其抑制剂可通过靶向抑制ZNF207/PRDX1/NRF2信号轴的激活, 为克服肿瘤治疗耐药提供了一种有效的干预策略[39]. 此外, 棕榈酰转移酶ZDHHC20也是一个重要靶点. 在HCC中, 抑制ZDHHC20则可能通过阻止脂肪酸合酶(fatty acid synthase, FASN)的棕榈酰化, 促进FASN降解, 进而抑制HCC的生长[29]. 同时, 靶向PRL3的抑制剂可通过抑制"GATAD1/PRL3/Akt"信号通路, 显著下调Akt的活化水平, 从而遏制HCC的生长[19].
对于在HCC中因表观遗传沉默(如启动子高甲基化)而失活的抑癌ZNFs, 恢复其表达是另一类有效策略. 例如, 对于ZNF382等抑癌基因, 使用DNA去甲基化试剂(如5-氮杂胞苷)或组蛋白去乙酰化酶抑制剂(如伏立诺他), 可能逆转其沉默状态, 重新发挥抑癌作用. 另一种策略是基因增补疗法, 即通过病毒载体或纳米颗粒等递送系统, 将抑癌ZNFs的cDNA导入HCC细胞, 使其恢复表达, 从而诱导肿瘤细胞凋亡或抑制其增殖.
鉴于信号网络的复杂性, 单一靶点干预易引发代偿性耐药, 因此基于ZNFs的联合策略可能显著提高HCC治疗效果. 首先, 锌离子代谢联合靶向治疗有望提高HCC患者治疗效果. 研究发现[50], 锌转运蛋白1和胞内Zn2+水平能够调控肿瘤相关巨噬细胞的内体功能, 影响肿瘤微环境. 在此基础上, 研究发现[51]补充锌剂联合索拉非尼或仑伐替尼的靶向治疗方案, 显示出比单一用药更显著的治疗效果. 其次, 多ZNFs协同靶向, 或ZNFs抑制剂与免疫检查点抑制剂联用, 通过重塑免疫微环境有望突破治疗瓶颈[52].
5 结论
ZNFs家族在HCC的发生与发展中扮演着核心而复杂的角色. 以C2H2型为核心的ZNFs通过驱动细胞周期进展、诱导EMT、增强肿瘤干细胞特性、诱导治疗耐药, 以及调控代谢重编程和肿瘤免疫微环境等多重机制, 共同推动HCC的恶性进展; 而抑癌ZNFs的表观遗传失活则解除了肿瘤细胞的早期生长抑制. 尽管前期研究中, ZNFs的促癌表型占据主要地位, 但其双重作用的动态平衡是决定肿瘤生物学行为的关键因素.
展望未来, 该领域的研究方向主要集中在以下几个层面: 第一, 深入阐明特定ZNFs在HCC中的具体作用机制及其相互作用的信号网络; 第二, 致力于开发针对ZNFs结构域, 如C2H2结构域或SCAN结构域的高特异性、高活性抑制剂或激动剂; 第三, 探索靶向ZNFs与现有化疗、靶向治疗或免疫治疗的联合策略, 以期克服耐药、提升疗效; 最后, 开展大规模、多中心临床研究, 验证ZNFs作为HCC诊断与预后分子标志物的可靠性.
随着对ZNFs生物学功能与互作网络的深入解析, 其有望成为实现HCC精准诊断与分层治疗的关键靶点分子, 为改善患者预后提供切实可行的转化路径.